- Štítky blogu
Hodnocení odolnosti k suchu u dvou odrůd pšenice s odlišnou strategií odezvy na sucho na základě kombinace fyziologie, proteomiky a metabolomiky
Nešporová T.1,2, Kosová K.1, Vítámvás P.1, Planchon S.3, Renaut J.3
1Ústav biochemie a mikrobiologie, Vysoká škola chemicko-technologická, Praha 6, ČR, 2Laboratoř stresové biologie a biotechnologie, Národní centrum zemědělského a potravinářského výzkumu (CARC), v.v.i., Drnovská 507/73, 16100 Praha 6-Ruzyně, ČR,3Proteomic Platform, Luxembourg Institute of Science and Technology (LIST), 5 Rue du Bomel, Hautcharage, Luxembourg
Úvod
Odezva rostlin na sucho je komplexní proces zahrnující významné změny na úrovni fyziologie, proteomiky i metabolomiky. Obdobně komplexní proces je i následná regenerace po znovuzalití. Hodnocení dat z těchto oblastí nám pomůže vytvořit komplexní pohled na odezvu rostliny na sucho a zjistit tak, které biologické procesy hrají v odezvě na sucho klíčovou roli. V naší studii jsme hodnotili odezvu dvou kultivarů pšenice s odlišnou strategií odezvy na sucho. Baletka jako příklad tzv. šetřiče („water-saver“), kdy rostlina již při mírném deficitu vody v půdě a v pletivech uzavírá průduchy, čímž snižuje ztráty vody, ale významně omezuje asimilaci CO2 prostřednictvím fotosyntézy. Tobak jako příklad tzv. plýtvače, („water-spender“), kdy rostlina nechává průduchy otevřené až do výrazného deficitu, čímž sice ztrácí vodu, ale neomezuje příjem CO2 pro fotosyntézu. U obou kultivarů jsme studovali odezvu na krátkodobé (30% obsah vody v půdě SWC, 7 dnů) a dlouhodobé (30% SWC, 17 dnů) sucho, a následnou krátkodobou (70% SWC, 12 h) a dlouhodobou (70% SWC, 3 dny) odezvu na znovuzalití na základě hodnocení vybraných fyziologických znaků (relativní obsah vody v listech RWC, osmotický potenciál, fluorescence chlorofylu Fv/Fm, charakteristiky spojené s čistou fotosyntézou a transpirací), analýzy totálního proteomu a metabolomu v listech a odnožovacích uzlech rostlin. Hodnocení získaných dat pomocí mnohorozměrných statistických analýz nám poskytlo komplexní proces na některé biologické procesy, které mohou hrát významnou roli v odezvě pšenice na sucho.
Cíl
Cílem naší práce bylo objasnit proteomické a metabolomické mechanismy zodpovědné za odlišnou odezvu na sucho u odrůd pšenice Baletka a Tobak.
Materiál a metodika
Rostlinný materiál a uspořádání pokusů: V pokuse byly použity mladé rostliny odrůd Baletka a Tobak (obě zdroj ÚKZÚZ, Brno, ČR), které byly vysety do květináčů se směsí hlíny a písku v poměru 7:2 a pěstovány v klimaboxu (Tyler, Maďarsko) za regulovaných podmínek (19°C, 350 µmol m-2s-1, 16 h fotoperioda) a regulované zálivky. Nejprve jsou rostliny až do fáze 2. listu pěstovány za optimální zálivky (70% půdní vodní kapacita SWC) a je odebrána kontrolní varianta, poté je zálivka snížena, aby bylo dosaženo 30% SWC po dobu 7 dnů (krátkodobé sucho) a 17 dnů (dlouhodobé sucho). Následně byly květináče znovuzality na 70% SWC a byly odebrány vzorky v intervalu 12 h (krátkodobá regenerace) a 3 dny (dlouhodobá regenerace).
Hodnocené fyziologické charakteristiky: U vzorků z každého odběru (kontrola, krátkodobé a dlouhodobé sucho, krátkodobá a dlouhodobá regenerace) byly stanoveny následující charakteristiky: relativní obsah vody v listech (RWC) na základě stanovení čerstvé hmotnosti FW, hmotnosti po nasycení vodou ve vlhkostní komoře TW, a suché hmotnosti DW dle vzorce: RWC(%) = (FW-DW)/(TW-DW)*100 (%). Osmotický potenciál byl stanoven jako osmolarita šťávy ze zmrazených listů pomocí osmometru VAPRO 5600 (Wescor Inc., Utah, USA) a následně vypočten dle van´t Hoffovy rovnice. Maximální fotochemická účinnost fotosystému II Fv/Fm byla stanovena pomocí FluorPen FP100 (PSI, Drásov, ČR) a charaktersitiky spojené s fotosyntézou (rychlost čisté fotosyntézy Pn) a transpirací (rychlost transpirace Tr, stomatární vodivost, intercelulární koncentrace CO2) byly stanoveny pomocí LCpro+ (Opti-Sciences, Inc).
Analýza totálního proteomu: Proteiny byly extrahovány pomocí TCA/aceton/fenolové extrakce (Vítámvás et al. 2015; Nešporová et al. 2024). Následně byly provedeny 2D-DIGE gelové analýzy (24 cm IPG stripy pI 3-10) s označením vzorků pomocí fluorescenčních barviv CyDyes (GE Healthcare). Gely byly oskenovány pomocí laserového scanneru Typhoon FLA9500 (GE Healthcare) a vyhodnoceny pomocí software SameSpot (TotalLab Ltd). Pro identifikace byly vybrány diferenciálně abundantní proteinové spoty (DAPS) vykazující > 3.5 změnu v uzlech a > 2.5 změnu v listech (ošetření vs kontrola) (p < 0.01). Spoty byly identifikovány pomocí MALDI-TOF (SciexTOF/TOFTM 5800, SCIEX) za použití MASCOT server s databází NCBI‑Triticeae (txid147389 staženo z NCBI database 16.8.2017, 213862 sekvencí) nebo JGI‑Triticum aestivum databáze (Taestivum_296_v2.2, staženo 20.7.2018, 293053 sekvencí)(Mayer et al., 2014). Za reliabilní byla považována identifikace min. 2 unikátních peptidů. Povolené aminokyselinové modifikace zahrnovaly karbamidomethylaci cysteinu, oxidaci methioninu a transformace tryptofanu.
Bioinformatická analýza proteomických dat: Funkční charakterizace proteinů byla provedena na základě identifikace proteinů v databázi Uniprot (www.uniprot.org) pomocí databáze GeneOntology (www.geneontology.org) na základě tří kritérií: buněčná lokalizace, molekulární funkce, a biologický proces. Protein-proteinové interakce byly vyhledány pomocí nástroje STRING (https://string-db.org/).
Analýza metabolomu: Metabolity byly extrahovány dle Lisec et al. (2006). Metabolity byly identifikovány pomocí plynového chromatografu 7890B (Agilent) se sběrem vzorků (Gerstel GmbH & Co), spojeným s 5977A kvadrupólovým hmotnostním spektrometrem (Agilent). Teplota rozhraní, injektoru a iontového zdroje byla 300, 250 a 230°C. Rychlost proudění helia byla 2 ml/min. Chromatograf byl spojený s kolonou Restek Rxi 5MS, 30 m x 0.25 mm x 0.25 μm (Restek GmbH).
Statistická analýza dat: Jednotlivé charakteristiky byly hodnoceny pomocí ANOVA (STATISTICA, verze 13, TIBCO). Pro mnohorozměrné analýzy, např. faktorovou a klastrovou analýzu, byla data nejprve transformována pomocí Z-skóre a poté byly analýzy provedeny v programech STATISTICA a R.
Výsledky
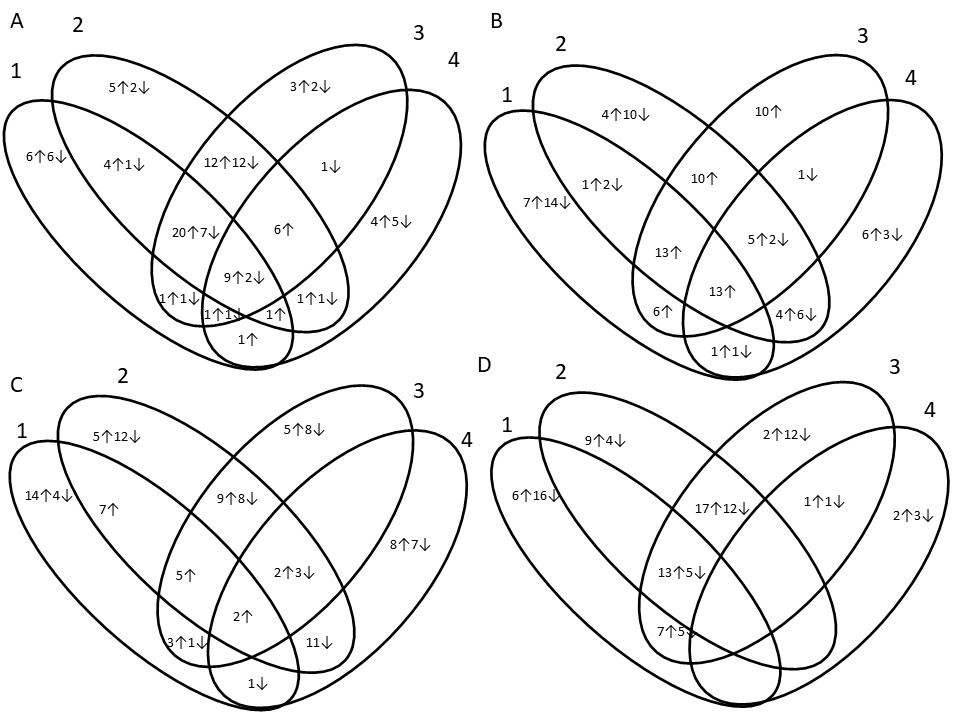
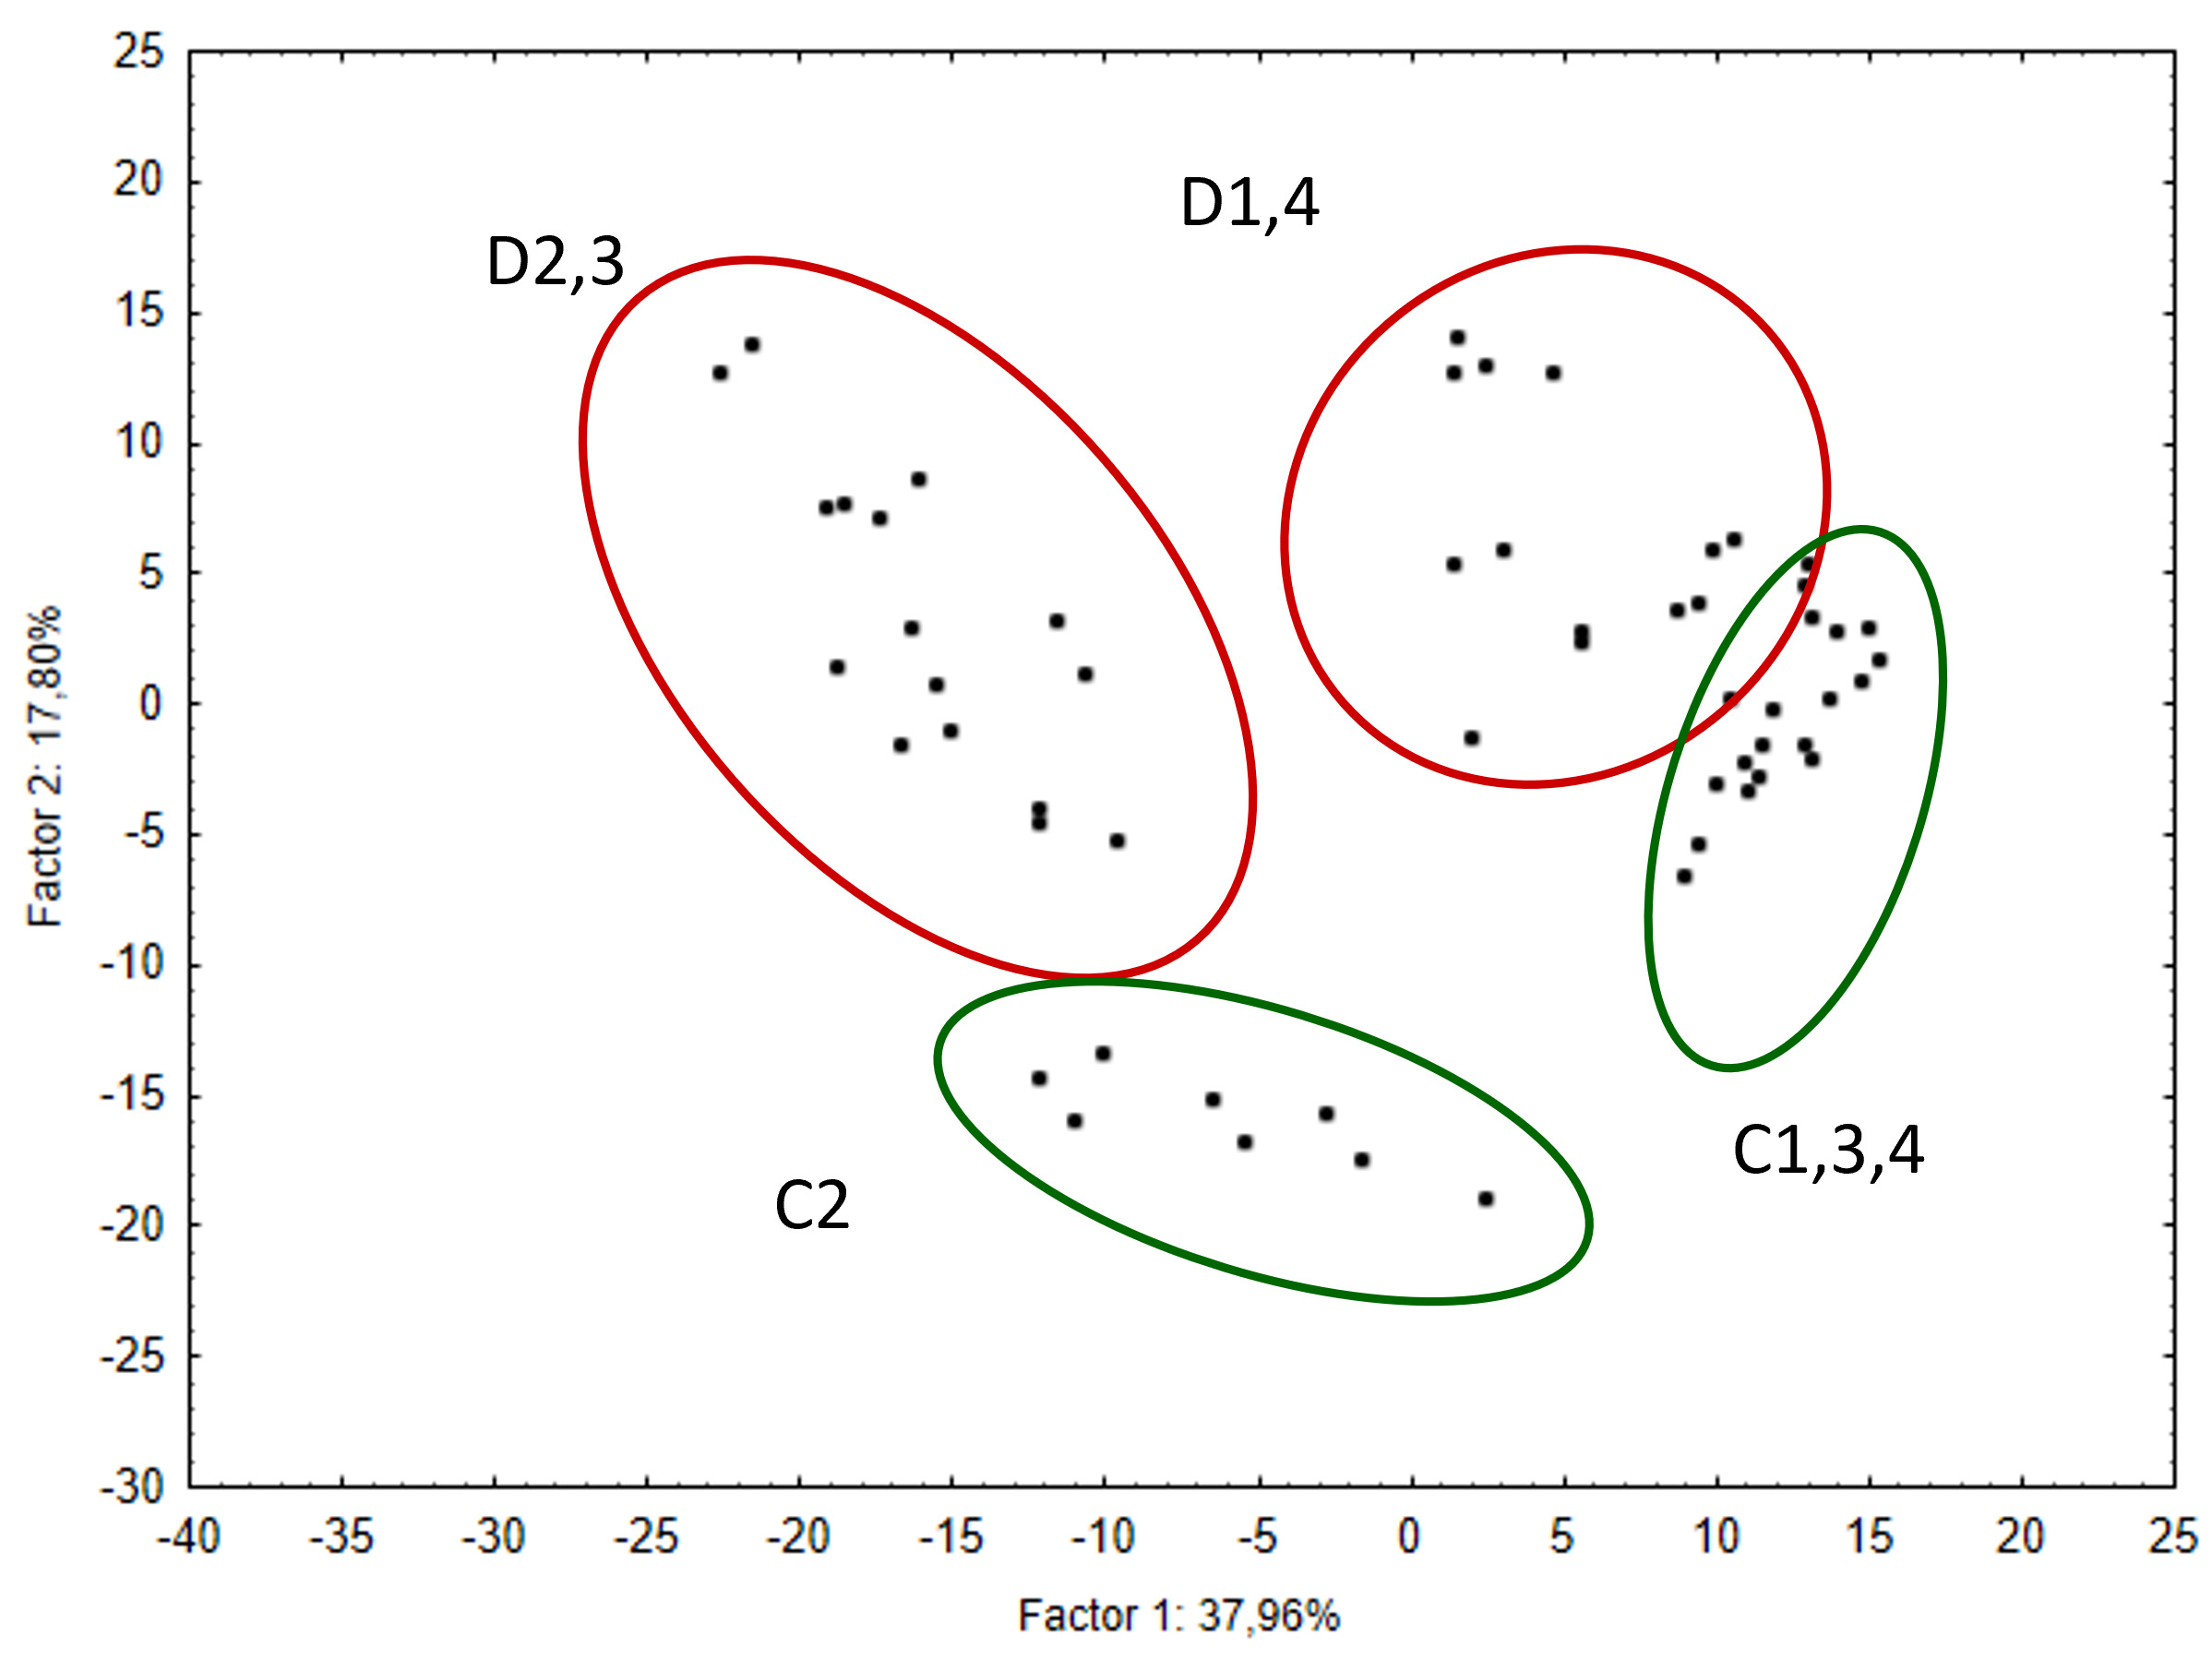
Analýza fyziologických charakteristik souvisejících s vodivostí průduchů, fotosyntézou a účinností využití vody za sucha ukázala odlišné strategie hospodaření s vodou; Baletka jako „šetřič“ s nižší fotosyntézou, vodivostí průduchů, avšak vyšší účinností využití vody (WUE) ve srovnání s odrůdou Tobak coby „plýtvačem“ (Obr. 1). Počty diferenciálně abundantních proteinových spotů (DAPS) detekovaných v listech a odnožovacích uzlech obou kultivarů v jednotlivých odběrech (krátkodobé a dlouhodobé sucho, krátkodobá a dlouhodobá regenerace po suchu) jsou uvedeny pomocí Vennových diagramů v Obr. 2. Faktorová analýza fyziologických, proteomických a metabolomických dat ukázala podobnost mezi kontrolní variantou, krátkodobým suchem a rostlinami po 3 dnech regenerace (znovuzalití) po dlouhodobém suchu, zatímco výsledky z dlouhodobého sucha a po 12 h znovuzalití se od kontrol významně lišily (Obr. 3).
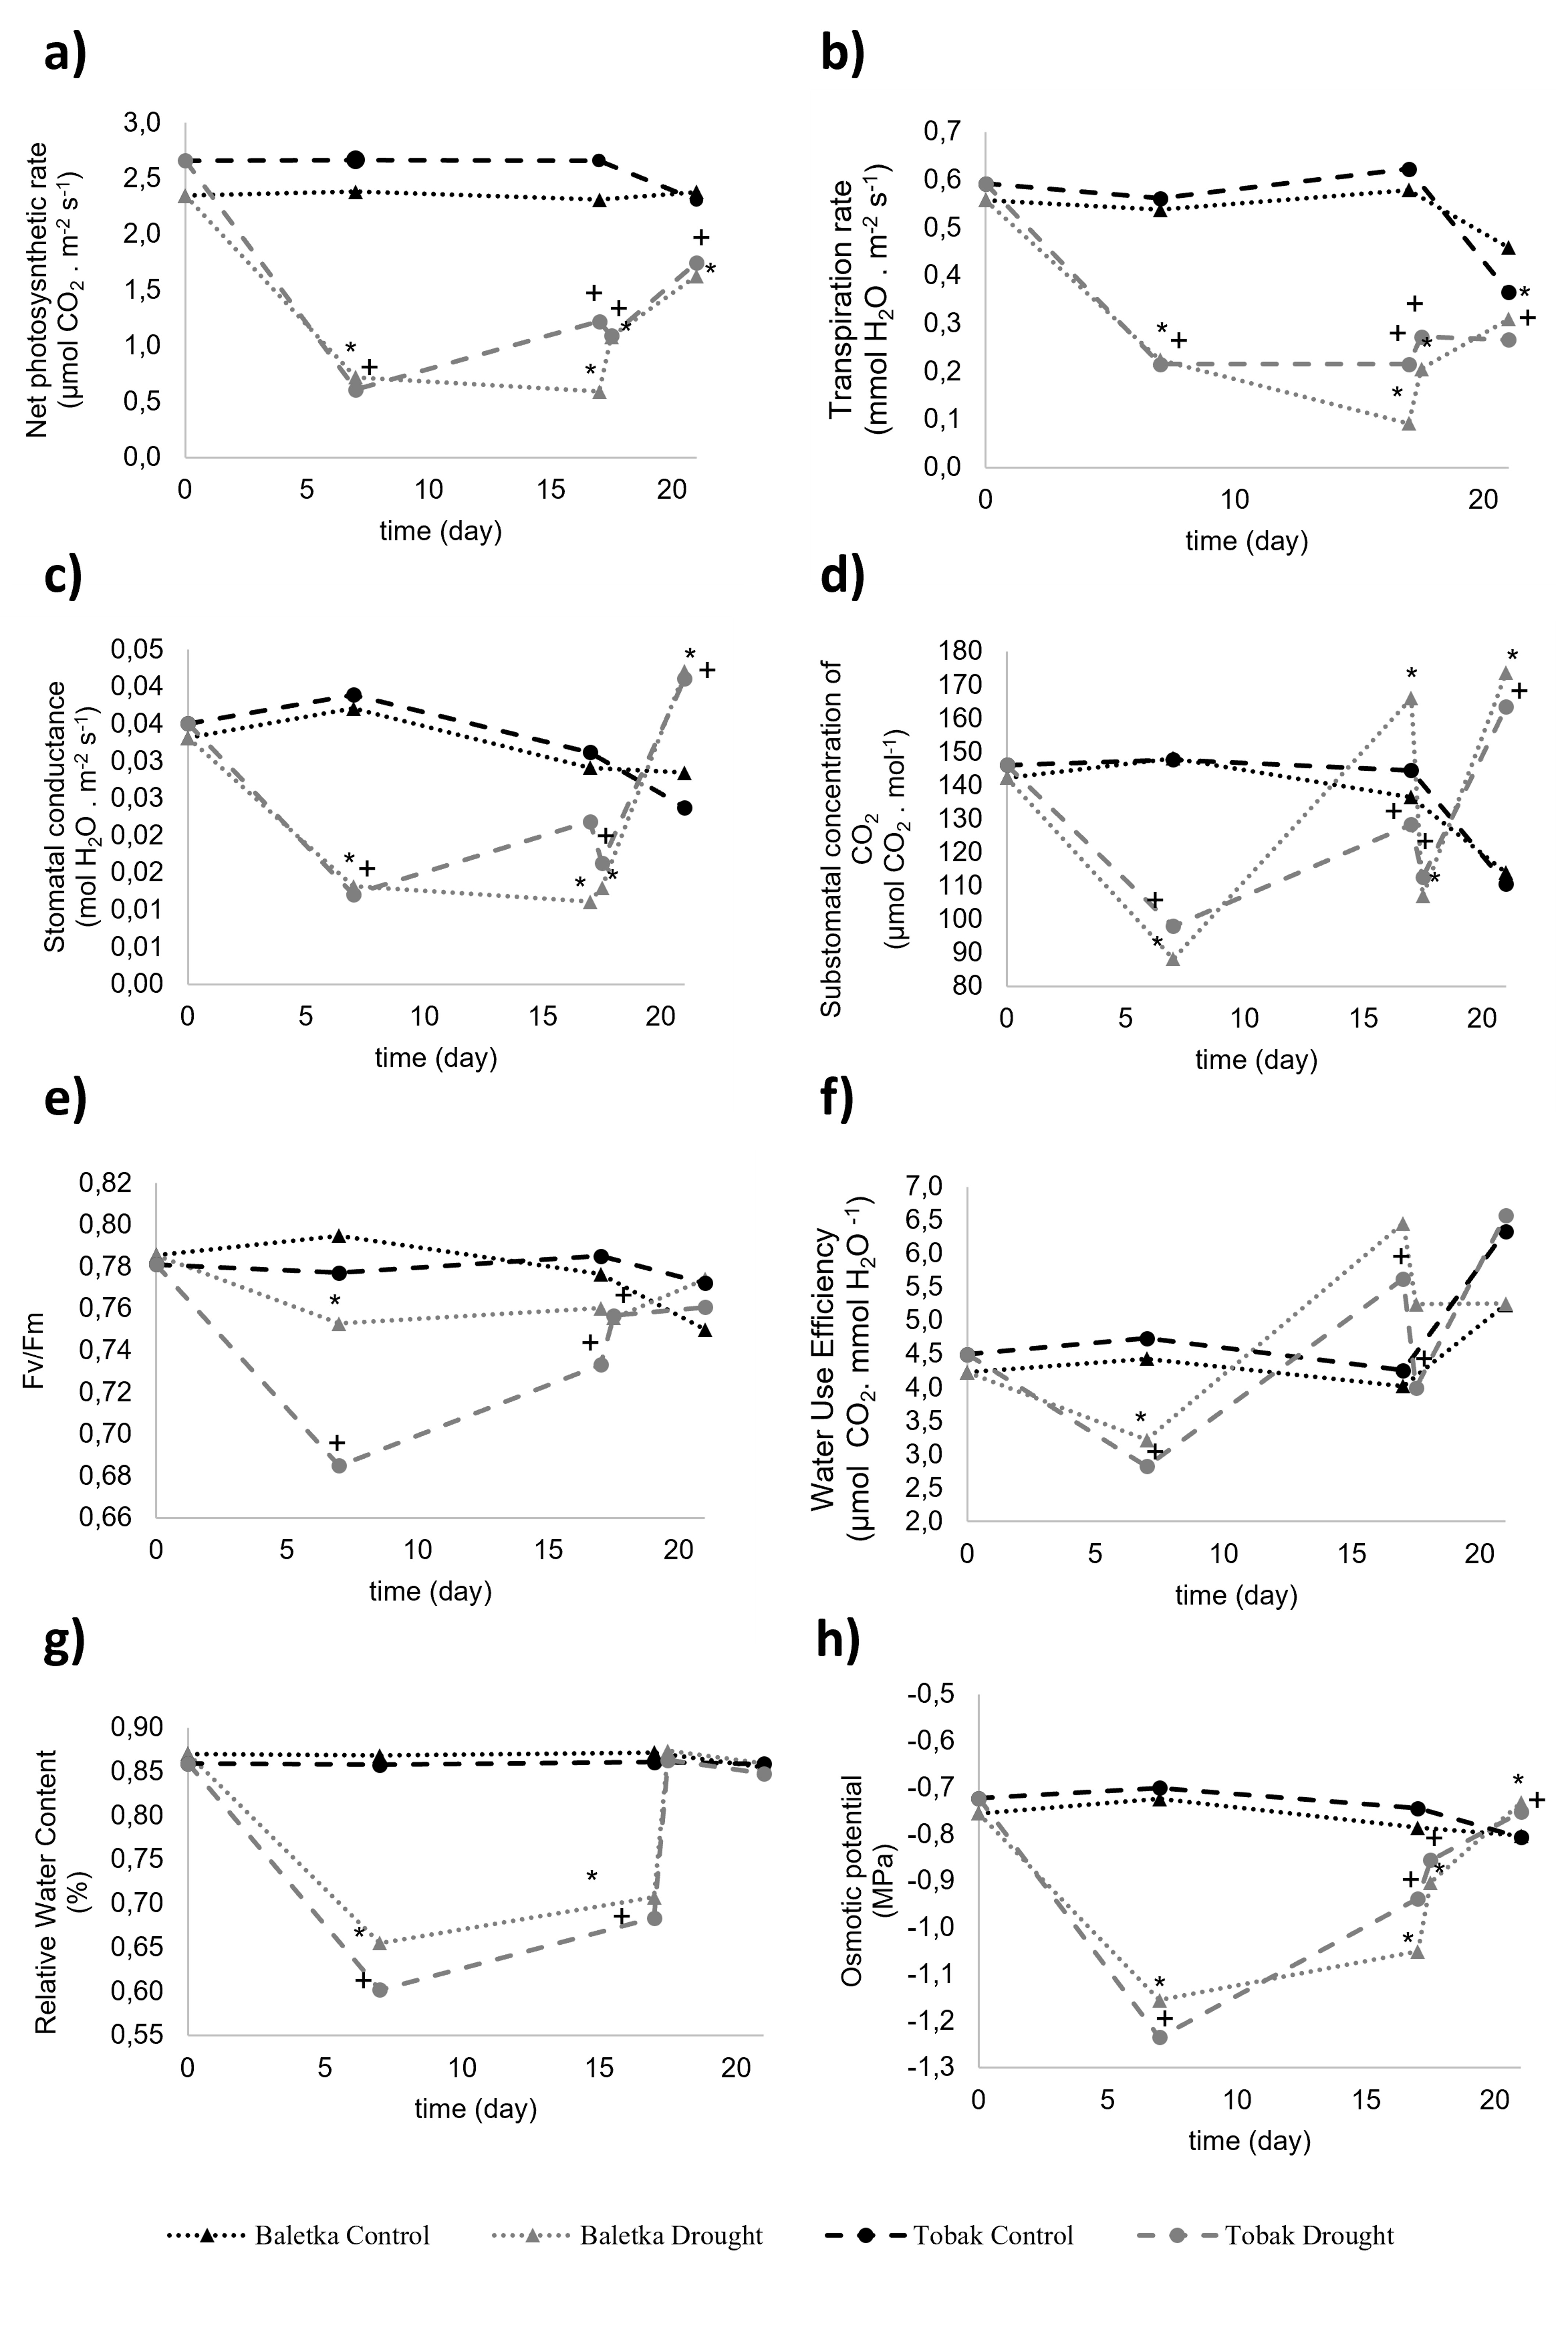
Obrázek 1. Rychlost čisté fotosyntézy Pn (A), rychlost transpirace (B), vodivost průduchů (C), substomatální koncentrace CO2 (D), Fv/Fm (E), účinnost využití vody (F), relativní obsah vody (G) a osmotický potenciál (H) u rostlin odrůdy Baletka (trojúhelníčky) a Tobak (kroužky) pěstovaných za kontrolních (zeleně) a stresových (červeně) podmínek.
Obrázek 2. Faktorová analýza vzorků z kontrolních podmínek (C1-4; zeleně) a stresových podmínek (D; červeně) zahrnujících krátkodobé sucho (1), dlouhodobé sucho (2), a následnou krátkodobou (12 h; 3) a dlouhodobou (3 d; 4) regeneraci.
Obrázek 3. Vennovy diagramy zobrazující DAPS mezi kontrolním odběrem a krátkodobým suchem (1), dlouhodobým suchem (2), krátkodobou regenerací (3) a dlouhodobou regenerací (4) v odnožovacích uzlech Baletky (A), v odnožovacích uzlech Tobaku (B), v listech Baletky (C) a v listech Tobaku (D). ↑ značí DAPS se zvýšenou abundancí, ↓ značí DAPS se sníženou abundancí.
Komplexní analýza fyziologických, proteomických a metabolomických dat z listů a uzlů obou kultivarů pšenice nové poznatky týkající se odezvy pšenice na sucho. Poprvé byl u pšenice detekován v odezvě na stres protein LTI65kDa, známý též jako protein RD29B, který patří do rodiny LTI65/LTI78 proteinů a je indukován nejen nízkou teplotou, ale i desikací a kyselinou abscisovou (ABA). Další suchem indukovaný protein LEA1 byl u odrůdy Baletka detekován i po 3 dnech regenerace, což ukazuje na jeho možné zapojení v procesech spojených s tzv. „stresovou pamětí“ („stress memory“) (Godwin a Farrona 2020; Kosová et al. 2025) u této odrůdy s konzervativní „water-saver“ strategií hospodaření s vodou.
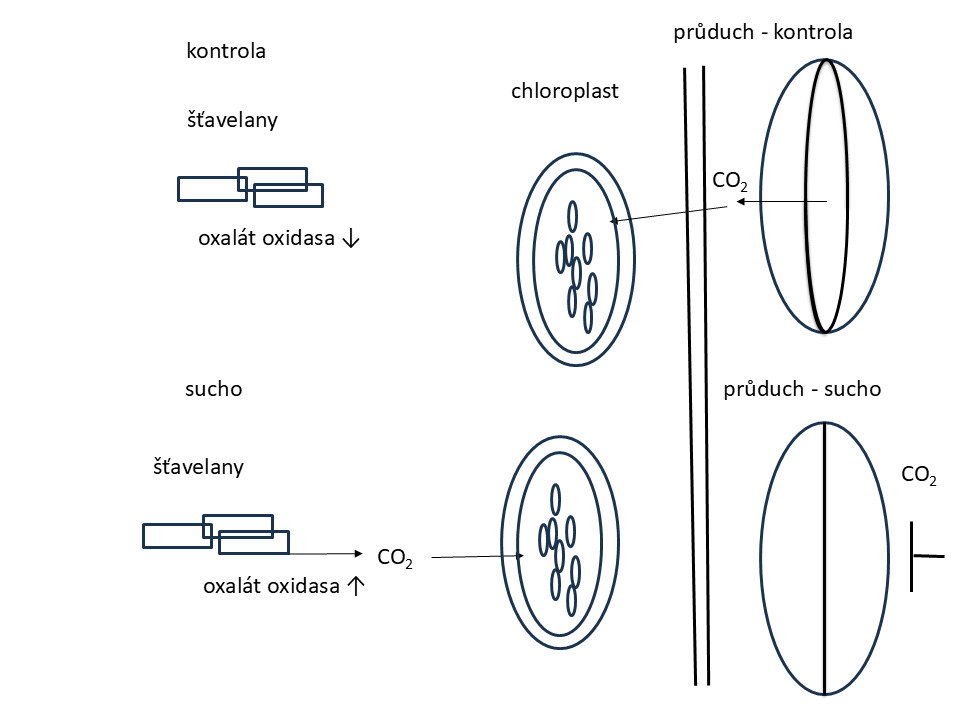
Obrázek 4. Význam šťavelanů jako alternativního zdroje CO2 pro C3 rostliny vystavené suchu. ↑ značí zvýšenou abundanci oxalát oxidasy, ↓ značí sníženou abundanci oxalát oxidasy.
Dalším zajímavým poznatkem je propojení výsledků fyziologických, proteomických a metabolomických dat ukazujících význam šťavelanů jako možného alternativního zdroje CO2 pro fotosyntézu C3 rostlin vystavených suchu, což je sice známo u některých rostlin, ale u pšenice to zatím popsáno nebylo. Korelace mezi vodivostí průduchů, obsahem kyseliny šťavelové a abundancí tzv. germin proteinu s aktivitou oxalát oxidasy vede k hypotéze o šťavelanech jako alternativním zdroji CO2 u pšenice vystavené dlouhodobému suchu (Bernier a Berna 2001; Tooulakou et al. 2016a,b). Význam krystalů šťavelanů jako alternativního zdroje CO2 u C3 rostlin vystavených dlouhodobému suchu je schematicky znázorněn v Obr. 4. Detailní mikroskopická analýza šťavelanových krystalů v listech pšenice vystavených suchu by mohla přinést nová data podporující tuto hypotézu.
Poděkování: Práce byla podpořena projekty Ministerstva zemědělství ČR (MZe ČR) QK22010293 a institucionárním projektem MZe ČR RO023.