- Štítky blogu
Analýza promotorové oblasti genu PavDAM3: Studium asociace s nároky na chladové požadavky pro ukončení dormance u třešně ptačí (Prunus avium L.)
Čmejlová J., Vávra R., Čmejla R.
VÝZKUMNÝ A ŠLECHTITELSKÝ ÚSTAV OVOCNÁŘSKÝ HOLOVOUSY s.r.o.
Úvod
V oblastech mírného klimatického pásu vstupují opadavé stromy během zimního období do tzv. dormance, kdy dochází k zastavení metabolických procesů a dělení buněk v meristémech. Pro ukončení dormance je třeba akumulace určitého počtu hodin chladu, aby mohly vnější stimuly nastartovat růst a kvetení. Potřebný počet hodin chladu je u třešní odrůdově specifický, bez ukončené dormance strom nevykvete. V dané lokalitě je tak třeba pěstovat pouze odrůdy s délkou dormance přizpůsobenou místním podmínkám.
Dormanci u rodu Prunus řídí 6 transkripčních faktorů z rodiny DAM genů. Na základě jejich uspořádání v genomu lze předpokládat, že hlavní transkripční regulační oblasti budou lokalizovány před geny PavDAM1 a PavDAM3 amohly by zodpovídat za odrůdovou specifičnost z hlediska požadavků na počet chladových hodin. Delece v promotorové oblasti PavDAM1 již byla u odrůdy třešně ‘Cristobalina’ asociována s extrémně krátkou dobou dormance a časným kvetením.
V rámci této studie byly porovnány promotorové oblasti PavDAM3 u odrůd s odlišnými požadavky na akumulované chladové hodiny pro vystoupení z endodormance. Cílem byla identifikace alternativních alel u třešní s nízkými nároky na dormanci oproti odrůdám vyžadujícím akumulaci vysokého počtu hodin chladu, pokud takové nukleotidové změny asociované s délkou dormantního období existují.
Materiál a metody
Pro pilotní experiment bylo vybráno 10 běžně pěstovaných odrůd třešní s různými požadavky na dormanci. Po izolaci DNA byla amplifikována promotorová oblast genu PavDAM3 a osekvenována. Výsledné sekvence byly porovnány navzájem a s referenční sekvencí odrůdy ‘Sato Nishiki’.
Genotypová data byla převedena na hodnoty {2;1;0}: alelické kombinace odrůdy ‘Sato Nishiki’ s dlouhou dormancí byly označeny hodnotou 2; ve všech pozicích identifikovaných jednonukleotidových polymorfismů (SNP) byla tato odrůda homozygotní. Alternativnímu homozygotu byla přiřazena hodnota 0, heterozygotu pak hodnota 1. Matice genotypů byla použita k výpočtu párové vazebné nerovnováhy (LD) ve formě koeficientu r², definovaného jako druhá mocnina Pearsonova korelačního koeficientu mezi dvojicemi markerů. Haplobloky byly určeny algoritmem, který spojoval sousední SNP do bloků při hodnotě r² ≥ 0,8.
Výsledky
Sekvenační analýza byla provedena v oblasti -1 až -1684 bp před hlavním iniciačním místem pro transkripci PavDAM3. Celkem bylo nalezeno 20 pozic, v kterých se získané sekvence lišily, ve všech případech se jednalo o jednonukleotidové změny. V prvním kroku byla provedena analýza potenciálních haplobloků, která na základě LD identifikovala 4 potenciální haplobloky (Tabulka 1).
Tabulka 1. Identifikované změny v promotorové oblasti PavDAM3. Pozice jsou číslovány vzhledem k začátku dominantního transkriptu (+1), v závorce je uveden typ polymorfizmu (nukleotid z referenční odrůdy ‘Sato Nishiki’ je uveden tučně).
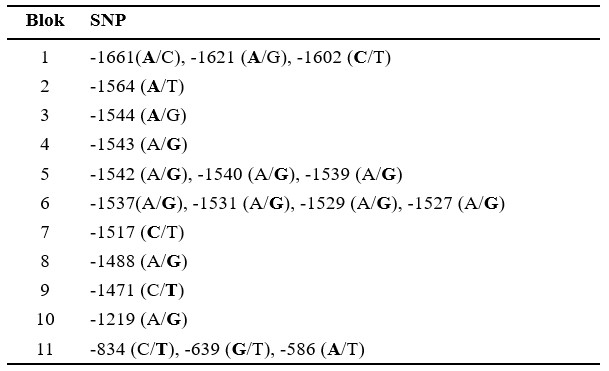
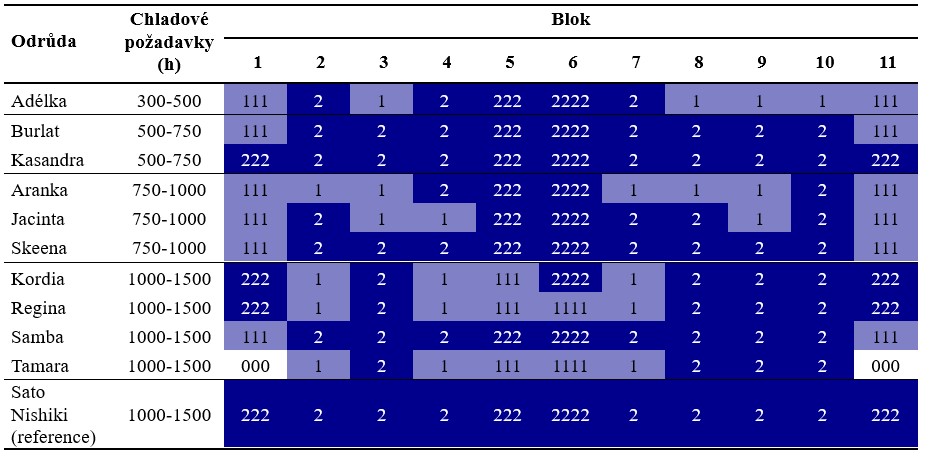
Výsledky sekvenování ukázaly vysokou konzervovanost promotoru PavDAM3 mezi odrůdami, první polymorfizmus byl nalezen až v pozici -586. Nejméně konzervovaný úsek se nacházel v oblasti mezi nukleotidy -1544 až -1517 a vykazoval 9 polymorfizmů. Identifikované změny však nebyly asociovány s chladovými požadavky jednotlivých odrůd (Tabulka 2).
Tabulka 2: Polymorfizmy promotoru PavDAM3 u 10 analyzovaných a jedné referenční odrůdy. Podbarvení buněk genotypů: tmavě modře – haplotyp ‘Sato Nishiki’, dle hypotézy asociace s vysokými nároky na chlad; bíle – alternativní haplotyp s předpokládanou asociací s nízkými požadavky na chlad.
Závěr
Přestože byla v promotoru PavDAM3 nalezena řada odrůdově specifických polymorfizmů, nepodařila se potvrdit hypotéza, že jsou tyto SNP asociovány s délkou endodormance.
Poděkování
Práce byla podpořena finančními prostředky na rozvoj organizace č. RO1526 od MZe ČR.